



Что такое растение
Общая площадь планеты Земля составляет 510 млн. км2. На долю суши приходится 149 млн. км2, Мировой океан занимает 361 млн. км2. И суша и океан заселены растениями и животными. Разнообразие и тех и других очень велико. Ныне установлено около 500 000 видов растений и более 1 000 000 животных.
Среди растений различают разные по окраске и строению водоросли, грибы, слизевики, семенные растения, в том числе голосеменные и цветковые. В подавляющем своем большинстве растения — автотрофные организмы, в основном фототрофные. Но грибы и слизевики гетеротрофны, чужеядны, т е. не сами (как автотрофные растения) строят необходимое для поддержания жизни органическое вещество, а черпают его из окружающей среды. В этом отношении с ними сходны бактерии, тоже относимые обычно к миру растений и в подавляющем большинстве тоже гетеротрофные.
При большом видовом разнообразии трудно найти признаки, общие для всех растений, и притом такие, которые не встречались хотя бы у некоторых животных. Одноклеточные водоросли и некоторые примитивные грибы, сохранившие очень низкий уровень организации, который был свойствен еще, вероятно, древнейшим их предкам, иногда очень сходны с простейшими животными. У ряда растений сходство с животными обнаруживается в строении и поведении специальных клеток размножения и так далее.
Но, отвлекаясь от этих частностей, можно все-таки указать немногие, свойственные подавляющему большинству растительных организмов общие свойства. Среди них прежде всего надо указать специфическое строение клетки — наличие в составе клетки растений твердой, не пропускающей твердых частиц, клеточной оболочки. Эта деталь строения свойственна и клетке гриба, и бактериальной клетке, и клеткам водорослей, и клеткам высших зеленых растений. Клеточная оболочка настолько вошла в программу развития клетки современного высшего растения, что при искусственном удалении целлюлозной оболочки с помощью фермента через несколько часов начинается образование новой клеточной стенки. Подобное явление наблюдается и в тех случаях, когда живое содержимое клетки вследствие нарушения целостности оболочки вытекает наружу — голый протопласт через некоторое время также покрывается оболочкой (водоросль вошерия). Приобретенная еще на очень ранних ступенях исторического развития организмов, оболочка закрепилась, вероятно, как защитное образование, но это сыграло решающую роль в питании клеток. Клетки, покрытые твердой оболочкой, могут воспринимать из окружающей среды необходимое для жизни только в растворенном состоянии.
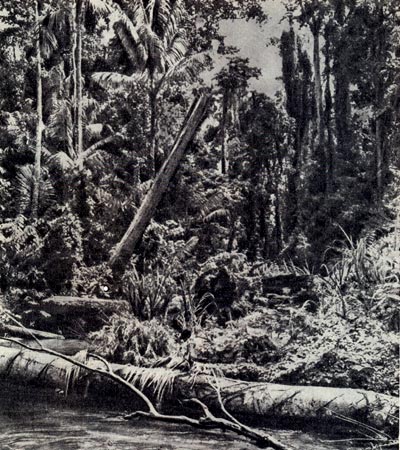
Рис. 1. Участок тропического леса
Приобретение твердой оболочки наложило отпечаток на всю дальнейшую эволюцию растений — питание их стало зависимо от размера поверхности соприкосновения тела растения с окружающей его средой. Вследствие этого строение большинства растений характеризуется более сложным, чем у животных, внешним расчленением. В процессе роста объем тела увеличивается, как известно, пропорционально третьей степени линейного увеличения размера; поверхность — только квадрату этой величины. Поэтому при сохранении геометрического подобия растущего тела величина наружной поверхности, приходящейся на единицу объема, должна уменьшаться, что не может не отразиться на эффективности обмена в сторону ее уменьшения. Это и привело, по всей вероятности, во-первых, к необходимости нарушения в процессе эволюции геометрического подобия за счет расчленения и усложнения наружного контура растения и, во-вторых, к тенденции незавершаемости роста тела растения.
Восприятие питания «всасыванием» было, вероятно, причиной и еще одного свойства растений — их малой подвижности.
Правда, даже некоторые высокоорганизованные растения могут менять свое место в пространстве. Так, корневищные растения, нарастая под землей, со временем развивают надземные побеги и отходящие от них придаточные корни все в новых и новых точках, в то время как первичный побег, возникший некогда из семени, отмирает. Благодаря этому такие растения продолжают свое существование не на том месте, где начиналась их жизнь. Но, во-первых, эти «ростовые» движения несравнимы по скорости и эффекту с теми, которые доступны животным, а во-вторых, они наблюдаются далеко не у всех растений. Есть ограниченные движения и у других растений. Лианы, обвивающие опоры или цепляющиеся за них, иногда перекидывают свои кроны с одного места на другое. Стебель в процессе роста производит так называемые нутационные движения. Листья многих растений из-за неравномерного роста черешков ставят листовые пластинки в наиболее благоприятные условия освещения. Нередки растения, закрывающие цветки на ночь, в то время как у других они закрываются на день. Листочки многих бобовых ежедневно с большой правильностью изменяют своё положение относительно горизонта. Тем не менее не будет ошибкой сказать, что большинство растений "неподвижны". Некоторые долговечные (многие древесные) раcтения не покидают своего места сотни и даже тысячи лет (секвойи). Это свойство большинства растений - сохранять за собой одно и то же место - относительно общее и, вероятно, тесно связано со способом восприятия питания, а тем самым - с наличием клеточной оболочки.
Дело в том, что за исключением немногих экологических специализированных групп (галофиты), наземные растения получают минеральное питание из ратворов малой концентрации. Извлекаемые из них растениями вещества обычно восполняются в субстрате за счёт выветривания и темпами, достаточными, чтобы обеспечить непрерывность питания в данном месте. Кроме того нарастание и ветвление корней приводят к тому, что их специализированные всасывающие части, оснащённые муфточками корневых волосков, проникают все в новые и новые точки корнедоступного объема субстрата. Быстрая перемена места, сопряженная с тратой энергии, не повысила бы обеспеченности наземного растения ни питательными материалами, ни водой. Что же касается водных растений, то они, окруженные водой, тем более не нуждаются в активном движении — движение и перемешивание воды (ветер, неравномерность нагрева и обусловленная этим конвекция) обеспечивают водные растения всем необходимым. Относительную неподвижность растений, вероятно, можно считать главной причиной особого способа их расселения. Животные обычно расселяются во взрослом, во всяком случае активном, состоянии. В противоположность этому для подавляющей массы растений характерно расселение зачатками.
Зачатки расселения (их называют еще диаспорами) у растений разнообразны. Это могут быть специализированные одиночные клетки, вырабатываемые растением и пассивно или активно отделяющиеся от него,— споры; у других ту же роль выполняют семена — сложно устроенные многоклеточные тела, содержащие в себе зародыш, т. е. маленькое, готовое к росту, но еще не растущее растеньице. У многих растений диаспорами служат специализированные части их вегетативного тела, известные в ряде форм (выводковые почки, метаморфизированные побеги и пр.). В целом разнообразие диаспор очень велико.
Зачатки расселения, в первую очередь споры и семена, во время расселения обычно находятся в состоянии покоя. В это время у них не обнаруживают ни роста, ни других видимых проявлений жизни. Они продолжают оставаться в таком инактивированном (неактивном) состоянии, пока посторонняя растению сила не поставит их в условия, благоприятные для дальнейшего развития. Тогда начинается формирование новой особи растения.
Представляют ли растения филогенетически единую группу — вопрос, по крайней мере, дискуссионный.
В главе «Растения в системе организмов» излагаются аргументы в пользу противоположного воззрения, согласно которому то, что обычно называют растениями, представляет три самостоятельные группы того же ранга, что и группа животных: дробянки (бактерии и сине-зеленые), грибы, растения (фотосинтезирующие).
С этой точки зрения «растения» в обычном понимании надо рассматривать как объединение организмов, обладающих сходными приспособлениями к питанию, т. е. как группу не филогенетическую, а экологическую.
Растительный покров простирается на огромных площадях континентов земного шара и акватории Мирового океана. Даже в Антарктиде на свободных от льда местах растут (правда, немногие) мхи и лишайники.
Жизнь на Земле в целом обеспечивается воздействием Солнца и атмосферы на зеленый растительный покров суши и океана.
Солнечный свет, распространяясь со скоростью 300 000 км/сек, достигает Земли за 8 мин. Большая часть светового потока, достигшего границы атмосферы, отражается, поглощается и рассеивается ею, и в итоге поверхность суши и морей получает меньше 1/2 (около 48%) энергии, поступающей в атмосферу.
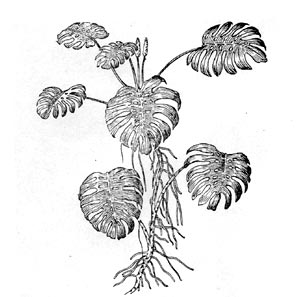
Рис.2. Монстера
Зеленый экран суши и океанов: лиственные леса тропических и умеренных широт, хвойные леса, луга, степи, полупустыни, пресноводный и морской планктон и бентос Мирового океана, необозримые пространства культурных полевых и садовых насаждений — представляет собой гигантский поглотительный объем для света и реактор фотосинтеза. В дождевых тропических лесах, образованных деревьями разной высоты, кроны их почти полностью смыкаются, а остающиеся небольшие промежутки часто заполнены верхушками богато олиственных лиан; свет почти не проникает под полог леса, и внутри его царят тень и полумрак (рис. 1). Но все же небольшое количество света поступает в виде бликов за счет лучей, многократно отраженных от блестящей поверхности листьев. Да и сомкнутость крон, конечно, не абсолютна — небольшие промежутки между листьями остаются. У некоторых растений дождевого тропического леса листовые пластинки вырезные, например у Monstera deliciosa (неправильно называемой филодендроном); в них образуются как бы окошки, пропускающие солнечный свет (рис. 2).
Высокая степень сомкнутости крон бывает не только в дождевых тропических лесах, но и в горных лесах тропической и субтропической зон, в некоторых вариантах влажного субтропического леса, иногда в таежных лесах. Удивительно не то, что образуются столь сомкнутые насаждения,— в этом проявляется стихия растительной жизни, стремящейся использовать с максимально доступной полнотой весь световой поток, поступающий на Землю. Удивительно, что и в этой глубокой тени все же живут некоторые растения, довольствуясь теми ничтожными порциями света, которые тем или иным путем могут полностью, в виде рассеянного света или бликов пробиваться сквозь зеленую толщу листвы.
Столь полное использование света, как в дождевом тропическом лесу или подобных ему формах лесной растительности, несмотря на присущую растениям способность к неограниченному росту, многократному ветвлению и неограниченному размножению, не всегда возможно. Обычно ограничивающим фактором оказывается недостаточная водообеспеченность, выражающаяся либо в малом количестве осадков, либо в сезонности их поступления. Но и в этих случаях тенденция к использованию светового потока в максимальной степени все же проявляется.
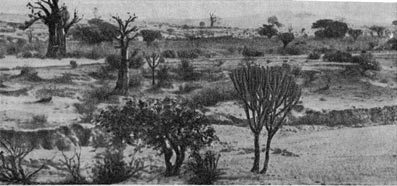
Рис.3. Участок саванны.
Можно указать в качестве примера хотя бы тропические ксерофильные леса и саванны. В первых обычен густой подлесок при не слишком высокой плотности крон; в саваннах деревья единичны, но зато имеется густой и разнообразный травяной, преимущественно злаковый, покров. Приспособленность растений к наибольшему использованию света можно наблюдать и в растительности умеренных широт. Не случайно, что под пологом древостоя лиственного леса часто наблюдается второй полог из крон кустарников, а под ним травяной покров, в котором иной раз выделяется особый слой совсем приземистых, точно прижатых к почве растений. Свет проходит благодаря такому строению леса как через серию фильтров, поглощающих в совокупности большую часть физиологически активной радиации (рис. 3).
Эту закономерность строения растительного покрова можно наблюдать даже в некоторых чисто травянистых сообществах.
Несмотря на обилие солнечного света и большую густоту зеленого покрова, растения используют лишь 1—2% падающей на них световой энергии. Но даже при этом в результате фотосинтеза образуются колоссальные количества органической материи.
В процессе фотосинтеза при взаимодействии солнечной энергии, воды и углекислого газа образуется органическое вещество и высвобождается свободный кислород. При этом используется лишь ничтожная часть поступающей в растение воды. Неизмеримо большая доля ее входит в состав цитоплазмы и особенно клеточных вакуолей; вода содержится и в клеточных оболочках. Значительная часть воды заполняет полости сосудов и соответствующих им по функции трахеид, представляя тончайшие водные нити. Они не стабильны — это как бы мельчайшие потоки, постоянно перемещающиеся вверх по растению к листьям. В этом водном потоке перемещаются и растворенные в воде вещества; они, так же как и вода, используются по мере надобности живыми клетками растений.
Вообще содержание воды в растении, хотя и изменяется от вида к виду и в пределах одного вида в зависимости от влажности места обитания, очень велико, составляя, например, в стволах деревьев около половины сырой массы и достигая в листьях некоторых растений (салата, капусты)90—95%;того же примерно уровня содержание воды в мякоти сочных плодов (томат, арбуз); у водорослей количество воды составляет 98% их сырой массы.
Содержащаяся в растении вода постоянно, хотя бы отчасти, обновляется благодаря, с одной стороны, испарению ее листьями (у растении, погруженных в воду, естественно, испарение отсутствует), с другой — поглощению новых порций из субстрата.
В целом же вода, находящаяся в растении, является той внутренней средой растительного организма, в которой совершаются все химические и физические процессы, в том числе и реакции фотосинтеза. Все эти явления очень сложны, и немалое значение в них принадлежит строению молекул воды и формам связи между ними.
Возвращаясь к фотосинтезу — одному из замечательнейших явлений природы, обратим внимание на то, что необходимый участник этого великого процесса -- углекислый газ — содержится в окружающей растение среде в малом количестве. В составе атмосферы на его долю приходится в среднем лишь 0,0321 %. Тем удивительнее способность зеленых (в широком смысле) растений (имеются в виду все растения, содержащие хлорофилл, включая и те, зеленая хлорофильная окраска которых маскируется красящими веществами иной цветности — красными, бурыми и др.) создавать огромные количества органических веществ. Достаточно указать, что зеленый покров земли ежегодно создает сотни миллиардов (4,5 * 1011) тонн органической материи.
Проникая внутрь зеленых растений через устьица на листьях и стеблях, углекислый газ растворяется в воде растительных тканей и при воздействии солнечной энергии и хлорофилла (об этом далее) вступает в сложные реакции. Происходит одно из замечательных явлении в природе фотосинтез. Фотосинтез - это окислительно-восстановительный процесс. Вода разлагается (окисляется) с выделением кислорода и отдачей водорода на восстановление углекислоты.
В атмосфере есть два источника свободного кислорода: диссоциация молекул водяного пара под воздействием коротких ультрафиолетовых лучей и фотосинтез. Первый процесс был, вероятно, единственным источником кислорода до появления на Земле хлорофиллсодержащих растений; фотосинтез, возникший с появлением зеленых растений, стал основной причиной массового накопления в атмосфере кислорода, содержание которого составляет в настоящее время около 21% (по объему) и постоянно поддерживается на этом уровне практически. Почти весь кислород современной атмосферы биогенного происхождения.
В нижних частях стратосферы под влиянием коротких ультрафиолетовых лучей (менее 2000А) молекулы кислорода распадаются на атомы, в связи с чем становится возможным образование молекул озона (03). Более длинные ультрафиолетовые лучи, поглощаемые озоном, разрушают молекулы последнего. В зависимости от поглощения энергии кислородом и озоном между ними устанавливается то или иное количественное соотношение. Область максимальной концентрации озона лежит на высотах 25—30 км. Здесь находится как бы экран из озона, который поглощает все ультрафиолетовые лучи с длиной волны от 3000 А и менее, губительные для жизни. Но этим значение озона не ограничивается, так как он поглощает не только ультрафиолетовые, но и часть инфракрасных лучей, уменьшая этим потерю тепла Землей.
Возвращаясь к углекислому газу, напомним, что подавляющее большинство живых организмов, в том числе и растений, выделяет углекислоту в процессе дыхания. Особенно много углекислоты выделяется из почвы благодаря присутствию в ней корневых систем, почвенных водорослей, бактерий и животных. Много углекислого газа выделяется при сжигании топлива, от промышленных процессов, извержений вулканов, лесных пожаров и др.
Растения дышат и днем и ночью, но фотосинтез совершается только в дневные часы. Огромна фотосинтетическая деятельность водорослей, как микроскопических, плавающих взвешенно в толще воды океанов, морей и озер, так и прикрепленных к прибрежным местам крупных водорослей, и даже морских травянистых цветковых растений, прикрепленных ко дну корневищами.
Интенсивность света в воде быстро убывает с глубиной. В озерах на глубине 10 м остается примерно 1%, а в океане на глубине 100 м — около 10% интенсивности света, падающего на поверхность воды. Наиболее продуктивный фотосинтез происходит не в поверхностном фитопланктоне, а на некоторой глубине (около 20— 25 м). В период полярных ночей фотосинтетическая деятельность растительного планктона почти прекращается, хотя под ледяным панцирем и при очень скудном проникновении света водоросли также жизнедеятельны.
Все организмы, способные к фотосинтезу, содержат хлорофилл (немногие бактерии, способные к фотосинтезу, имеют пигменты, отличающиеся от хлорофилла). Это зеленый пигмент, содержащийся в особых органоидах растительной клетки — хлоропластах. Они взвешены в цитоплазме клетки в виде мельчайших зеленых гранул и обладают способностью движения в зависимости от освещения. В зеленых листьях высших растений хлоропласты представляют собой мелкие белково-липоидные тельца. В клетке их содержится от 20 до 100. Общее количество хлоропластов во взрослом дереве достигает десятков и сотен миллиардов, но у низших одноклеточных водорослей бывает несколько или даже одна зеленая пластида. Величина зеленой пластиды у высших растений обычно 3—5 мк.
Зеленые пластиды чутко реагируют на освещение, и хлорофилл образуется в них только на свету. Молекулы хлорофилла поглощают свет. Энергия его преобразуется в процессе синтеза органического вещества в энергию химической связи органических (углеродистых) соединений.
Помимо хлорофилла, пластидам свойственны и другие пигменты, обладающие способностью поглощать лучистую энергию. Вообще все растения, способные к фотосинтезу, содержат, кроме хлорофилла, группу желтых пигментов — каротиноидов (это каротины, ксантофиллы,в том числе фукоксантин бурых и некоторых других водорослей).
Каротиноиды поглощают коротковолновые лучи спектра (синие, фиолетовые и ультрафиолетовые) и передают поглощенную энергию хлорофиллу. У некоторых растений (сине-зеленые и красные водоросли) имеются дополнительные пигменты иной химической природы, чем каротиноиды, но также поглощающие свет и передающие поглощенную энергию хлорофиллу. Это так называемые фикобилины (синий фикоциан и красный фикоэритрин).
Цветковые растения не всегда зеленые, иногда листья у них бывают красные, лиловатые и т. п. Такая окраска вызвана пигментами клеточного сока—антоцианами, которые маскируют зеленый цвет хлорофилла. Зеленые листья часто располагаются перпендикулярно лучам солнца или под углом к свету. Положение поверхности листьев относительно направленности светового потока в известной степени определяет интенсивность освещения. Иногда у некоторых растений (например, у эвкалиптов) взрослые листья пассивно висят на черешках. Они перпендикулярны лучам только при восходе и закате солнца.
Существенным продуктом фотосинтеза в зеленом листе являются фосфорные эфиры cахаров (гексозо-фосфаты), которые, освобождая фосфорную кислоту, могут конденсироваться в дисахарид — сахарозу или в полисахарид — крахмал. В некоторых случаях гексозо-фосфаты дефосфорилируются, образуя свободные моносахариды — чаще всего глюкозу и фруктозу. Только первые фазы фотосинтеза световые, остальные не требуют света и являются темновыми реакциями. Первичные продукты фотосинтеза вовлекаются во внутриклеточные химические процессы и служат исходным материалом для построения других, часто очень сложных органических соединений. Результатом фотосинтеза является также образование нуклеиновых кислот, белков и других сложных веществ.
Такова в самом простом изложении схема фотосинтеза. Но наряду с синтезом органических веществ из неорганических элементов в биосфере совершается распад значительной части органических комплексов до исходных неорганических. Этот распад происходит через дыхание, а после гибели зеленых растений и животных — разложение осуществляется благодаря деятельности гетеротрофных растений (бактерий и грибов), населяющих почвы и водные бассейны, обитающих также на трупах животных и т. п.
Процесс разложения органического вещества сложен и имеет многостепенный характер. Но он всегда имеет, по крайней мере в основном, биологическую природу. Продукты разрушения, возникающие под воздействием одних организмов, «подхватываются» другими, а образуемые ими вещества служат объектом биологической переработки третьих, и так далее. Интересно, что закономерная последовательность участия разных организмов в процессе разрушения органической массы обнаруживается даже в том случае, когда разрушители принадлежат к одной группе организмов: такие явления установлены, например, относительно грибов, разрушающих опад в лесах.
Разложение органического вещества в конечном счете приводит к одному и тому же итогу. Углерод в составе углекислого газа поступает в окружающую среду. При разложении образуется также вода. Таким образом, оба исходных для фотосинтеза вещества вновь возвращаются в окружающую среду. В сложных органических соединениях, создаваемых растениями в процессе их жизнедеятельности, равно как и в веществах животного происхождения, содержатся в том или ином количестве минеральные элементы. Усваиваемые растениями из почвы, эти элементы возвращаются в почву и становятся вновь доступными для использования новыми поколениями растений. Следовательно, почти все вещества, вовлекаемые растениями в жизненные процессы, совершают циклическое движение. Это — биологический круговорот веществ. Очень важно осознать, что запасы минеральных веществ в почве не бесконечны. Поэтому без разложения органического вещества и возвращения в землю элементов минерального питания с течением веков и тысячелетий корнедоступная часть толщи земной коры должна бы стать совершенно бесплодной. Биологический круговорот веществ, обусловленный совокупной деятельностью автотрофных и гетеротрофных организмов, является, как следует из сказанного, необходимым условием постоянства жизни, непрерывности ее существования на нашей планете.
В биологическом круговороте веществ особое место принадлежит азоту. Этот элемент входит в белки, т. е. в материальный субстрат жизни, и поэтому совершенно необходим для всех живых существ. При разложении органических веществ азот уходит в атмосферу либо в виде газообразных соединений, либо в свободном состоянии. Возвращение азота в почву, откуда его черпают растения, осуществляется сложным путем, в результате процесса, в котором участвуют специальные бактерии и некоторые другие организмы, связывающие газообразный азот атмосферы в соединения, доступные для потребления растениями. (Подробнее об этом см. Азотфиксирующие бактерии.)
Надо заметить, что при некоторых условиях процессы разложения органического вещества замедляются, вследствие чего образуются скопления полуразложившихся растительных остатков. Такое происхождение имеют торф, бурый и каменный угли. В этом случае нередко сохранность некогда живших растений бывает достаточной, чтобы составить представление о внешнем облике, а нередко и их внутреннем строении. Залежи торфа и углей представляют исключительный экономический интерес. Эти органогенные породы составляют предмет энергичных поисков, а разведанные их запасы — объекты интенсивной эксплуатации. По мнению ряда ученых, нефть также имеет органогенное происхождение.
Поскольку бесхлорофильные растения способны довести мертвую растительную массу до полного разложения, постольку весь растительный мир в целом, т. е. в совокупности его автотрофных и гетеротрофных компонентов, можно рассматривать как принципиально автономную природную систему, внутренне противоречивую (созидающие органическое вещество и разрушающие его растения), саму себя поддерживающую, т. е. с биогеохимической точки зрения единую.
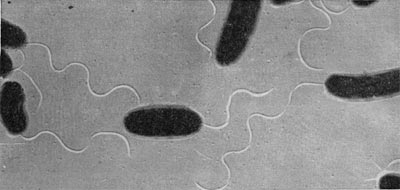
Рис. 4. Представители прокариотов - палочковидные бактерии.
Развивавшийся в процессе эволюции мир животных, существующий исключительно на гетеротрофной основе, включился в использование как непосредственных продуктов фотосинтеза, так и более сложных органических веществ, создаваемых растениями. Один из результатов этого — удлинение времени существования органических продуктов и увеличение их разнообразия, так как животные не только потребляют, но и преобразуют поглощаемую ими органическую пищу в более сложные вещества.
Важность этого определяется прежде всего тем, что некогда «уловленная» зеленым растением солнечная энергия, заключенная в потенциальной форме в органическом веществе, осуществляет большую работу, выполняемую организмами. Она тем продуктивнее, чем длительнее цикл превращений, испытываемый органическим веществом, созданным зелеными растениями.
Характеристика растений в целом, нарисованная выше, по необходимости схематична. Существующие ныне и ранее жившие на Земле растения очень разнообразны, и более конкретные представления о мире растений можно получить, рассматривая их по группам, объединяющим растения , более сходные между собой, чем с теми, которые относят к другим группам того же вида. Всякую классификационную группу называют таксоном. Наиболее крупные из них именуются отделами (или типами). Каждый отдел обычно представляет разнообразное по составу объединение растений разного ранга. В него входят классы, подразделяемые далее на порядки, в числе последних различают семейства, которые далее делят на роды. Род включает большее или меньшее количество видов. Вид — основная единица классификации растений, хотя в ряде случаев и она подразделяется на таксоны еще более низкого ранга.
В современной классификации каждый отдел рассматривается как категория, единая в эволюционном отношении, происшедшая от одного общего предка. Все разнообразие видов, родов и других таксонов, относимых в данный отдел, — результат длительной эволюции, осуществлявшейся как процесс приспособления к различным условиям жизни и совместному с другими растениями использованию среды.
В этом издании принято деление растительного мира на отделы, каждый из которых с должной подробностью рассматривается в этом и последующих томах «Жизни растений».
Отделы, в свою очередь, можно подразделить на две категории по организации вегетативного тела растений. У одних и