



Флористическое деление суши и океана
Флористическое деление суши
Каждая страна, каждая область суши имеет свою, характерную для нее флору, т. е. свой набор семейств, родов и видов, который более или менее отличается от флоры других стран. Флоры (как и фауны) никогда не бывают совершенно одинаковыми в двух странах или в двух разных областях одной и той же страны.
Эти различия отчасти объясняются разнообразием геологических, орографических, почвенных и особенно климатических условий. Так, бананы, ананас или тропические пальмы не могут произрастать в областях с холодным или даже умеренным климатом, а северная береза не встречается в тропических странах.
Но в то же время в тропических областях разных стран и особенно разных материков наблюдаются большие различия в составе флоры, причем даже в тех случаях, когда почвенные и климатические условия очень сходны. Так, семейство бромелиевых (Bromeliaceae), куда входит ананас, встречается почти исключительно в тропической и отчасти субтропической Америке (только один вид в тропической Западной Африке), в то время как другое тропическое семейство — пандановых (Pandanaсеае) совершенно отсутствует в Америке и приурочено к тропическим и отчасти внетропическим областям Старого Света. Таких примеров можно привести множество.
Эти факты говорят о том, что характер флоры данной области нельзя объяснить только почвенными и климатическими условиями. Очевидно, флористические различия объясняются и другими факторами. Таковы географическая изоляция, миграция и дифференциальное вымирание (полное или частичное) отдельных флористических комплексов или целых флор.
В результате географической изоляции многие области Земли характеризуются очень своеобразной флорой, в составе которой много эндемичных (произрастающих только на данной территории) видов, родов и даже семейств.
Исключительное своеобразие и высокий эндемизм флоры Австралии, Мадагаскара и Новой Каледонии объясняются очень длительной их изоляцией. Географическая изоляция характерна не только для материков и островов, но и для отдельных высоких гор или целых горных систем (например, Альпы, Кавказ или Гималаи), пустынь, окруженных более влажными территориями, и вообще для любой области, окруженной теми или иными барьерами, служащими преградой для распространения растений.
Одним из важнейших факторов, изменяющих состав флоры любой страны, является расселение, или миграция, растений, т. е. их распространение из одной области в другую. Процесс миграции происходит с разной скоростью, то очень быстро, то, наоборот, очень медленно и постепенно.
В некоторых случаях из одной области в другую могут переноситься целые растения. Это относится к одноклеточным и небольшим водным растениям (водоросли, ряски и др.) или к растениям типа перекатиполе, например Ceratocarpus arenarius из семейства маревых (Chenopodiaceae). Обычно переносится не все растение, а лишь определенная его часть: споры, семена и плоды, соплодия, сеянцы (у мангровых растений), выводковые почки (у печеночника маршанции), клубеньки и пр.
Для обозначения частей растения, служащих для распространения, шведский ботаник Сернандкр (1927) предложил специальный термин — диаспора (от греч. diaspeiro — разбрасываю вокруг, рассеиваю). Синонимами диаспоры являются единицы распространения: зачаток, пропагула, гермула, мигрула и диссемула.
Морские течения, ветер и животные (особенно птицы) могут способствовать быстрому распространению диаспор иногда на очень далекие расстояния. Изолированные вулканические острова, возникающие в океане далеко от материков, могут заселяться только таким путем. Именно так заселялись, например, Гавайские острова. Широкое распространение многих пресноводных растений обязано главным образом птицам, а распространению мангровых растений способствуют морские течения.
В большинстве случаев, однако, диаспоры распространяются более медленно и постепенно, и, как правило, расселение идет по определенным путям и направлениям, которые называются миграционными путями.
Миграционный путь редко представляет собой вполне удобную трассу для беспрепятственного распространения растений. Обычно на нем встречаются различного рода преграды, затрудняющие расселение. Наиболее удобным миграционным путем является путь, названный известным палеонтологом и биогеографом Дж. Симпсоном (1965) «коридором». «Коридор» представляет собой миграционную трассу, вдоль которой возможно массовое распространение многих видов или даже целых флор из одной области в другую. Типичным «коридором» служило существовавшее в третичное время море Тетис.
«Коридорами» являются также речные долины или непрерывные горные цепи, как, например, Гималаи.
В отличие от «коридора» Симпсон называет «фильтром» миграционный путь, по которому расселение происходит очень избирательно. Для одних видов растений «фильтр» представляет собой вполне удобный миграционный путь, в то время как для многих других он является непреодолимым барьером. В результате не все элементы флоры данной области могут мигрировать в другую область. Для лесных растений «фильтром» может быть степь, а для степных — пустыня. Как отмечает Симпсон. межконтинентальные мосты суши отличаются сильно выраженным «фильтровым» характером. Таким «фильтровым мостом» является, например, мост, соединяющий Северную Америку с Южной. Другим, более близким нам, примером является кавказский перешеек, служащий «фильтровым мостом» между южнорусскими и переднеазиатскими флорами.
Основным, и притом широко распространенным, типом миграционного пути является «ступенчатый» путь.
Он представляет собой прерывистый путь, состоящий из отдельных «ступенек», подобно каменной переправе через речку. Это или цепь островов (архипелаг типа Алеутских островов), или цепь изолированных гор, отделенных глубокими долинами, или цепь озер. В лесостепной зоне «ступенчатым» миграционным путем является ряд лесных участков, отделенных степными пространствами. В отличие от «коридоров» «ступенчатый» путь характеризуется значительно меньшей скоростью миграции и большей избирательностью (в этом отношении он приближается к «фильтру»). Наличие многих островных «ступенек» особенно характерно для Тихого океана, что играло очень большую роль в истории флоры Тихоокеанского бассейна.
В результате совместного действия трех основных факторов эволюции, миграции и вымирания (частичного или полного) - возникла чрезвычайно сложная и мозаичная картина современной флоры Земли. Эволюция не происходит без миграции, хотя бы очень ограниченной, а миграция, когда она происходит медленно и постепенно, обычно сопровождается эволюционными изменениями, хотя бы на подвидовом уровне. Вымирание обычно также представляет собой процесс медленный и постепенный. Но во многих случаях благодаря резким изменениям климатических и других физико-географических условий, а иногда и по чисто биологическим причинам происходит резкое изменение или даже катастрофическое уничтожение целых флор. Так, например, из-за оледенений, происходивших в четвертичном периоде, на значительных пространствах Северной Евразии была уничтожена богатая лесная третичная растительность, отдельные участки которой сохранились лишь в некоторых убежищах (рефугиумах) третичной флоры, например в Колхиде и Талыше. После уничтожения прежней флоры всегда рано или поздно следует интенсивная иммиграция, и тогда образуется новая флора, иногда смешанная, возникшая из разных источников. Ярким примером может служить остров Кракатау близ Явы, на котором вулканическое извержение в 1883 г. полностью уничтожило весь растительный покров, но уже в 1933 г. на нем успешно произрастали растения 271 вида.
Флора каждой страны слагается из: уцелевших и неизменившихся или слабо изменившихся древних форм, обитавших здесь еще до четвертичного периода; видов, представлявших непосредственный результат изменения третичных форм под влиянием условий жизни в данной стране; видов, переселившихся в позднейшую эпоху.
В своей классической работе «Опыт истории развития флоры южной части Восточного Тянь-Шаня» (1888) А. Н. Краснов обозначает флору всякой данной страны формулой
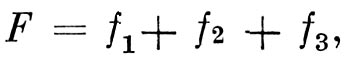
где F совокупность всех ныне живущих видов; f1, f2, f3 — три указанных выше элемента. На основании относительного преобладания того или иного из этих трех элементов А. Н. Краснов различает три типа флор.
Первый тип флоры, который известен под названием реликтового, характерен для Канарских островов, Японии, Китая, некоторых частей Северной Америки и многих других стран. Благоприятные орографические и климатические условия способствовали сохранению большого процента мало изменившихся древних, реликтовых форм, уже давно произрастающих в данной области. Флоры подобного типа наиболее приближаются к идеальной формуле F = f1.
«Большая часть Западной Европы, — пишет А. Н. Краснов, — может быть представительницей другого типа. Ход исторических событий был здесь особенно бурный, непостоянный. Подобно тому как древняя греко-римская цивилизация погибла под напором вторгнувшихся варваров — и от нее до нас дошли лишь жалкие остатки, так же точно, за исключением немногих представителей, под влиянием холода ледникового периода погибли роскошные третичные формы — и новая, арктического характера флора заняла их место. Но господство ее продолжалось лишь некоторое время; вскоре, вследствие обусловленного различными признаками смягчения климата, древняя флора стала теснить арктическую и во многих местах вытеснила ее почти совершенно. Таким образом, Европа была страной постоянного движения форм, страной переселений и, в то время как в Японии и на Мадейре за весь длинный период времени, протекший от конца третичного периода до настоящей минуты, почва была одета флорой приблизительно сходного характера, в Европе можно найти много пунктов, флора которых за этот период изменилась радикально.
Таким образом, тут флора менялась дважды. И хотя ныне существующая и сходна с древнетретичной, но она все же стоит от нее так же далеко, как далеки итальянцы от своих славных предков — римлян. Флора здесь стремится приблизиться к идеальному случаю F = f3». Флоры подобного типа были названы миграционными.
Флора Средней Азии может служить, по мнению А. Н. Краснова, типом третьего рода флор. «С давно прошедших времен и до настоящей минуты климат страны постоянно изменяется, но изменения эти происходят все в одну и ту же сторону. Как в странах первого типа, так и здесь ледниковый период и другие климатические изменения хотя и давали себя чувствовать более или менее сильно, но не могли, однако, изменить общего хода событий — в данном случае, например, постепенного усыхания, усиления континентальности. Постепенное и все усиливающееся действие одних и тех же факторов на флору не могло не вызвать в ней соответствующих приспособлений и изменений.
В то время как в Западной Европе, при постоянных изменениях климата и переселениях, как полагают Христ и Де Кандоль, не образовалось со времен третичного периода ни одного хорошего вида, здесь, под влиянием векового и постоянно усиливающегося действия одних и тех же факторов на миллионы поколений, можно ожидать — на основании многих данных — противного. Здесь, где флора ближе всего к идеальному F = f2, легче, чем где-либо, путем сравнения ее с третичной или флорами типа F = f1 изучать историю перерождения палеоарктической флоры в современную. Хотя и здесь формула флоры будет F = f1 + f2 + f3 но при преобладании /2 остальные, менее многочисленные элементы легче могут быть выделены». Такие флоры можно назвать трансформационными.
Эти три установленных А. Н. Красновым типа флор редко встречаются в чистом виде. и в природе мы обычно имеем дело с различными их комбинациями.
Сравнительное изучение флор разных стран привело к необходимости создать флористическую систему, т. е. разделить земной шар на естественные флористические единицы. Эти попытки предпринимались уже давно. Одна из первых, и притом для своего времени чрезвычайно удачная, принадлежит датскому ботанику Скоу (1823). Скоу разделил флору земного шара на 25 царств, некоторые из которых, в свою очередь, подразделяются на провинции (термины, до сих пор принятые в ботанической географии). В таком делении Скоу, как и последующие авторы, учитывал степень эндемизма, т. е. число таксонов, произрастающих только на данной территории. Он считал, что для выделения той или иной территории в особое флористическое царство необходимо, чтобы по крайней мере половина видов и четверть родов были эндемичны. Кроме того, флористическое царство должно характеризоваться также эндемичными семействами или хотя бы семействами, характеризующимися разнообразием в пределах территории царства. Современный подход к флористическому районированию во многом близок к принципам, сформулированным много лет назад Скоу.
Впоследствии разработкой флористической системы земного шара занимался ряд крупных ботаников, из которых наиболее крупный вклад сделал А. Энглер.
Все последующие системы, в том числе флористическая система автора этих строк, представляют собой дальнейшее развитие флористического деления А. Энглера, первый вариант которого был опубликован в 1882 г., а последний — в 1924 г.
Существует некоторое, хотя и не очень строгое, соответствие между рангом единиц флористической системы (в современной ботанической литературе единицы флористической системы называются фитохорионами): царствами, областями, провинциями и округами — и таксономическим рангом тех систематических единиц (таксонов), по которым устанавливается различие между флористическими территориями. Так, флористические царства характеризуются определенным, в некоторых случаях довольно значительным, семейственным эндемизмом и очень высоким родовым эндемизмом, в то время как флористические области устанавливаются о'бычно на основании наличия эндемичных родов и достаточно высокого видового эндемизма. Флористические области обычно представляют собой крупные очаги видообразования и часто характеризуются эндемичными секциями и подсекциями даже в крупных неэндемичных родах. Флористические провинции далеко не всегда характеризуются эндемичными родами,- и их видовой эндемизм значительно менее высокий, чем у областей. Наконец, округи обладают главным образом подвидовым и лишь слабо выраженным видовым эндемизмом. Округи — это самые молодые фитохорионы, происхождение которых относится к геологически недавнему времени, очень часто к наиболее поздним эпохам четвертичного периода.
Флора суши земного шара подразделяется на 6 флористических царств (цветная карта 2 на вклейке).
I. Голарктическое царство
Голарктическое царство — самое крупное из всех и занимает больше половины всей суши. Оно охватывает всю Европу, северную внетро-пическую Африку, всю внетропическую Азию и почти всю Северную Америку. Несмотря на огромную протяженность его территории и ее разъединенность на европейскую и североамериканскую части, флоры отдельных областей царства тесно связаны между собой и имеют общее происхождение.
В составе голарктической флоры около 40 эндемичных семейств, из которых назовем Calycanthaceae, Glaucidiaceae, Hydrastidaceae, Circaeasteraceae, Hypecoaceae, Trochodendraceae, Tetracentraceae, Cercidiphyllaceae, Eupteleaceae, Platanaceae (один вид в Индокитае), Eucommiaceae, Leitneriaceae, Paeoniaceae, Stachyuraceae, Davidiaceae, Helwingiaceae, Adoxaceae, Scheuchzeriaceae. Широко представлены семейства магнолиевых (Magnoliaceae), лавровых (Lauraceae), лютиковых (Ranunculaceae), барбарисовых (Berberidaceae), гамамелидовых (Hamamelidaceae), буковых (Fagaceae), березовых (Betulaceae), ореховых (Juglandaceae), гвоздичных (Caryophyllaceae), маревых (Chenopodiaceae), гречишных (Polygonaceae), свинчатковых (Plumbaginaceae), чайных (Theaceae), ивовых (Salicaceae), крестоцветных (Brassicaceae), вересковых (Ericaceae), первоцветных (Primulaceae), мальвовых (Malvaceae), молочайных (Euphorbiaceae), волчниковых (Thymelaeaceae), розоцветных (Rosaceae), камнеломковых (Sa-xifragaceae), бобовых (Fabaceae), кизиловых (Cornaceae), аралиевых (Araliaceae), зонтичных (Apiaceae), крушинных (Rhamnaceae), горечавковых (Gentianaceae), бурачниковых (Boragi-naceae), норичниковых (Scrophulariaceae), губоцветных (Lamiaceae), колокольчиковых (Cam-panulaceae), сложноцветных (Asteraceae), лилейных (Liliaceae), ирисовых (Iridaceae), орхидных (Orchidaceae), ситниковых (Juncaceae), осоковых (Сурегасеае) и злаков (Роасеае). Из хвойных широко представлены сосновые (Pinaceae) и кипарисовые (Cupressaceae). Папоротники представлены главным образом семействами аспидиевых (Aspidiaceae) и многоножковых (Polypodiaceae). В большинство этих семейств входит много эндемичных голарктических родов и множество эндемичных видов.
Голарктическое царство подразделяется на три подцарства — Бореальное, Древнесреди-земноморское и Мадреанское.
А. Бореальное подцарство
Бореальное подцарство — самое обширное из трех подцарств голарктической флоры. В то же время оно характеризуется наиболее богатой флорой, в составе которой гораздо больше эндемичных семейств и родов, чем в двух других подцарствах. Для некоторых областей Бореаль-ного подцарства характерно значительное число древних и примитивных семейств и родов.
1. Циркумбореальная, или Евросибирско-Канадская, область.
Это самая крупная флористическая область суши, значительная часть которой находится на территории Советского Союза. Сюда входят Европа (за исключением частей, относящихся к Средиземноморской области), Северная Анатолия, Кавказ (за исключением аридных частей и Талыша), Урал, Сибирь, Дальний Восток (за исключением юго-восточной части по среднему течению Амура), Камчатка, Северный Сахалин, северные Курилы, Алеутские о-ва, Аляска, большая часть Канады и небольшая часть США (в районе оз. Верхнего и в горах к северо-востоку от оз. Онтарио). В большинстве флористических систем евразийская и Северо-Американская части области относятся к разным областям и лишь немногими, как, например, Браун-Бланке (1923), признается единая Евросибирско-Североамериканская область. Для этой области наиболее характерны широколиственные и хвойные леса, а также тундра и степи.
Из хвойных наиболее распространены виды: сосны (Pinus), ели (Picea), пихты (Abies) и лиственницы (Larix), а в Канаде также цуга (Tsuga) и туя (Thuja). Из многочисленных лиственных пород наиболее характерны для этой области виды: дуба (Quercus), бука (Fagus), березы (Betula), ольхи (Alnus), клена (Acer), граба (Carpinus), тополя (Populus), ивы (Salix), ясеня (Fraxinus), вяза (Ulmus), липы (Tilia), грецкого ореха (Juglans), каркаса (Celtis), острии (Ostrya), кизила (Cornus). Из других древесных растений характерны также виды: сливы и вишни (Prunus), ежевики (Rubus), боярышника (Crataegus), груши (Pyrus), яблони (Mains), рябины (Sorbus), спиреи (Spiraea), клекачки (Staphylea), рододендрона (Rhododendron), жимолости (Lonicera), калины (Viburnum), бузины (Sambucus), крушины (Rhamnus), брусники и черники (Vaccinium). Наряду с лесами очень характерны луга, которые в южных районах Европейской части СССР и Сибири переходят в степь. Для северных районов характерны обширные болота и тундра. В горах лесная растительность образует пояса, верхний из которых обычно состоит из хвойных лесов. Выше лесного пояса расположен пояс высокогорной (субальпийской и альпийской) растительности, очень богатой эндемичными формами.
Во флоре Циркумбореальной области нет эндемичных семейств, но здесь много эндемичных или почти эндемичных родов, в том числе крестоцветные Lunaria (Средняя и Юго-Восточная Европа), Borodinia (Восточная Сибирь), Gorodkovia (Северо-Восточная Сибирь), Redowskia (Якутия), род Soldanella из семейства первоцветных (Южная и Средняя Европа), зонтичные Physospermum, Astrantia и Thorella (последний род только в Европе), род Pulmo-naria (медуница) из семейства бурачниковых, род Erinus из семейства норичниковых (Пиренеи, Апеннины и Альпы), три рода из преимущественно тропического семейства гесне-риевых — Ramonda (Центральные и Восточные Пиренеи и прилегающие горы Северо-Восточной Испании, Балканский п-ов) и Haberlea и Jankaea (оба на Балканском п-ове), род Stratiotes (телорез) из семейства водокрасовых, сложноцветное Telekia (от Средней Европы до Кавказа), а также много эндемичных видов. Особенно много эндемичных видов в горных районах -в Пиренеях, Альпах, Карпатах, на Кавказе, в горах Сибири и Канады.
Обширная Циркумбореальная флористическая область расчленяется на ряд провинций, объединенных особенностями состава флоры и своим эндемизмом. Учитывая, что большая часть Циркумбореальной области лежит в пределах территории СССР, мы считаем нелишним несколько подробнее охарактеризовать ее и дать перечень всех провинций, в том числе лежащих за пределами СССР.
Арктическая провинция. В эту циркумполярную провинцию входят Гренландия, Исландия, Фарерские о-ва, Ян-Майен, северные безлесные районы Норвегии, Финляндии, Европейской части СССР и Сибири (включая все Чукотское нагорье и низовья Анадыря), Медвежий, Шпицберген, Земля Франца-Иосифа, все острова сибирских морей, безлесные районы Северной Америки, все острова к северу от Североамериканского материка; в Беринговом море Арктическая провинция доходит на юг до о-вов Прибылова.
Флора этой провинции очень бедна и насчитывает немногим более 1000 видов. При этом во флоре Гренландии около 400 видов, Исландии — 375 видов, востока Болыпеземельской тундры — 468 видов, Новой Земли — 200 видов, Земли Франца-Иосифа — только 37 видов. Флористически относительно наиболее богата Чукотка, насчитывающая около 800 видов. Это-объясняется тем, что в течение плейстоцена она не подвергалась сплошному оледенению. Эндемичных родов в Арктической провинции почти нет, если не считать маленького рода Dupontia (всего 2 вида) из семейства злаков. Но эндемичных видов и подвидов в арктической флоре более 100, главным образом на Чукотке и Аляске. Среди них имеются лютик (Ranunculus sabinei), мак (Papaver polare), несколько видов ивы (Salix arctica и др.), виды крестоцветного рода Вгауа, виды мытника (Pedicularis), злаки (Colpodium vahlianum, С. wrightii, Puccinellia Angustatа) и др.
Арктическая флора сравнительно очень молода. Хотя первые этапы ее развития относятся, вероятно, к началу четвертичного (антропогенового) периода, но полностью она сформировалась лишь в течение послеледникового, или голоценового, времени, т. е. за последние 10 тыс. лет. При этом очень большую роль сыграла иммиграция видов, произраставших ранее вокруг пояса сплошного оледенения.
Растительный покров Арктической провинции беден и почти лишен деревьев. На юге, особенно в более многоснежных районах, характерны кустарниковые сообщества. Кустарники представлены главным образом арктическими видами ивы и березы. Очень характерны кустарнички из семейства вересковых (виды Vaccinium и Arctostaphylos) и травянистые растения из семейства осоковых — виды пушицы (Eriophorum) и осоки (Сагех). В более северных широтах растительность состоит из практически одноярусных сообществ. Особенно характерны виды куропаточкой травы (Dryas) из семейства розоцветных и некоторые стелющиеся ивы (Salix polaris и др.), а также многолетние травянистые растения из семейства злаков, крестоцветных и гвоздичных. Очень характерны виды камнеломки (Saxifraga) из семейства камнеломковых, мытника (Pedicularis) из семейства норичниковых, лапчатки (Potentilla) из семейства розоцветных и оксирия (Oxyria digyna) из семейства гречишных. Однолетних трав очень мало, а нередко они полностью отсутствуют.
Атлантическо-Европейская провинция. Простирается от северо-западных и северных частей Пиренейского п-ова до Юго-Западной Норвегии и включает большую часть Франции (Армориканский массив, Аквитанский и Парижский бассейны, Центральный массив), низовья Рейна, большую часть Северо-Германской низменности, Ютландию, всю Великобританию и Ирландию с прилегающими островами. Ее восточная граница приблизительно соответствует восточной границе падуба (Ilex aquifolium) в Западной Европе. В Северо-Восточной Европе ряд атлантических видов достигает Финского залива. Атлантические виды распространены в Парижском бассейне до Парижа, иногда даже до Шампани и захватывают низменные части Центрального массива.
Эндемичные роды Petrocoptis из семейства гвоздичных (Пиренеи) и Thorella из семейства зонтичных (Португалия и Франция); имеется несколько десятков эндемичных видов, из которых отметим хохлатку (Corydalis claviculata), европейский утесник (Ulex europaeus) и ряд близких к нему видов, английский дрок (Genista anglica), щетинковидный луговик (Deschampsia setacea). Характерно наличие целого ряда теплолюбивых растений, что объясняется мягкостью зимы.
Леса образованы главным образом листопадными деревьями, дубами и буком, из которых первые преобладают на юге, а вторые — в центральной части, на севере и востоке. В Западной и Центральной Франции (Нормандия) появляется также белая пихта (Abies alba). Нередок каштан (Castanea sativa). Характерно наличие в подлеске вечнозеленых растений: падуба (Ilex aquifolium), иглицы (Ruscus aculeatus). Обычен плющ (Hedera helix).
Наряду с лесами распространены кустарниковые заросли и верещатниковые пустоши, для которых характерны вересковые (Calluna и Erica) и безлистные бобовые (Ulex europaeus, Genista anglica и Cytisus scoparius).
Централъноевропейская провинция простирается от Центрального массива, Лотарингского плоскогорья, массива Арденны, Рейнских Сланцевых гор, Юго-Восточной Норвегии, Южной Швеции и Аландских о-вов до побережья Финского залива (включая побережье Карельского перешейка и окрестности Ленинграда). Восточная граница проходит через Латвию, Юго-Восточную Литву (к югу от окрестностей Вильнюса) и, огибая с востока Беловежскую пущу, идет западнее Львова к югу на Днестр и далее через окрестности Черновцов и далее по Пруту спускается к Нижнедунайской низменности.
Типичная среднеевропейская флора обычно не идет на восток дальше Беловежской пущи и восточных предгорий Карпат, но отдельные элементы доходят до Валдайской возвышенности и даже до Свердловска, причем выклинивание этих элементов происходит довольно постепенно, что сильно затрудняет определение восточной границы провинции. В общем восточная граница более или менее соответствует общей восточной границе распространения таких растений, ка